
Das biochemische Konzept des Moonlighting muss ich im Grundstudium gelernt haben, weil ich im Hauptstudium keine Biochemie hatte und es in meiner Promotion keine Rolle spielte.
Es handelt sich um ein biologisches Grundkonzept, das man kennen muss, wenn man in der Pharmaindustrie arbeitet bzw. Patienten behandelt, deren Krankheitsbild mit einem Moonlighting Protein, wie dem Spike-Protein, zusammenhängt.
Was ist „Protein Moonlighting“?
In der Genetik galt lange Zeit die eiserne Regel: Ein Gen = Ein Protein. So hat man es auch ursprünglich als zentrales Dogma in der Schule einmal gelernt.
Ein Gen enthält den Bauplan für ein ganz bestimmtes Protein, und dieses Protein erfüllt genau eine feste Aufgabe in der Zelle. Doch die Natur hält sich selten an starre Regeln und ist komplexer als das Schulbuch zugibt. Das, was im Schulbuch steht, nennt man didaktische Reduktion oder “Lügen für Erwachsene”.
Protein Moonlighting („Protein-Mondschein“ oder „Mondschein-Proteine“) ist ein Phänomen, das das zentrale Dogma von ein Gen = ein Protein komplett auf den Kopf stellt.
Im 19. Jahrhundert stand der Begriff “Moonlighting” im englischsprachigen Raum zunächst allgemein für illegale Aktivitäten, die im Schutz der Dunkelheit stattfanden. Daher auch der Begriff “Moonshine” (Deutsch: “Mondschein”) für den schwarzgebrannten Alkohol der Prohibitionszeit.
In den 1950er Jahren wandelte sich die Bedeutung im US-amerikanischen Sprachgebrauch hin zu dem, was wir heute als Zweitjob oder Nebentätigkeit kennen. Wenn Arbeiter tagsüber ihrem normalen Handwerk nachgingen und abends/nachts heimlich (oft ohne Wissen des Hauptarbeitgebers) einen zweiten Job annahmen, arbeiteten sie sprichwörtlich „unter dem Mondschein“.
Als Wissenschaftler in den 1990er Jahren nach einem Namen für Proteine suchten, die eigentlich für Aufgabe A zuständig sind, aber „heimlich“ noch einen oder bis zu 11 ganz anderen Zweitjobs erledigen wie die GAPDH (Glycerinaldehyd-3-phosphat-Dehydrogenase), liehen sie sich den Begriff aus der Arbeitswelt (Zweitjob / Nebentätigkeit).
„Moonlighting“ beschreibt also die erstaunliche Fähigkeit eines einzelnen Proteins, zwei oder mehr völlig unterschiedliche und voneinander unabhängige Jobs in unserem Körper zu erledigen.
Es ist, als würde ein tagsüber pflichtbewusster Buchhalter nachts heimlich als erfolgreicher Jazz-Musiker auf der Bühne stehen. Absolute Proteinspezifität ist in der Natur entgegen alten Annahmen somit eher die Ausnahme als die Regel.
Wie funktioniert die molekulare Schwarzarbeit?
Damit ein Protein „moonlighten“ kann, nutzt es clevere Tricks, um je nach Situation seine Funktion komplett zu verändern:
Der Ortswechsel (Zellulärer Kontext): Ein Protein kann im Inneren einer Zelle als Stoffwechsel-Enzym arbeiten. Wird es jedoch in einen anderen Bereich oder an die Zelloberfläche transportiert, übernimmt es plötzlich eine ganz neue Rolle, z. Bsp. bei der Signalübertragung.
Die Formwandlung: Manche Proteine verändern ihre räumliche Struktur oder schließen sich zu Gruppen (Oligomeren) zusammen. Durch diese Flexibilität und eine gewisse „intrinsische Unordnung“ der Eiweißketten werden ungenutzte Bereiche frei, die völlig neue biologische Aufgaben ermöglichen.
Der biochemische Schalter: Durch Umweltreize, die Verfügbarkeit bestimmter zellulärer Stoffe oder Bindungspartner wird das Protein augenblicklich angewiesen, seinen Zweitjob anzutreten.
Die Jobs haben chemisch oft absolut nichts miteinander zu tun. Fällt eine Funktion aus, kann die andere unter Umständen trotzdem fehlerfrei weiterlaufen.
Warum macht die Natur das?
Aus evolutionärer Sicht ist Protein Moonlighting ein Sparmodell. Statt für jede kleine Aufgabe im Laufe der Jahrmillionen ein völlig neues Gen zu entwickeln, „rekrutiert“ der Körper einfach bereits vorhandene, stabile Proteine für neue Aufgaben. In etwa wie man das aus der Pharmaindustrie von repurposed drugs kennt, also Medikamenten, die für einen Zweck entwickelt wurden, dann aber auch für andere Krankheiten erfolgreich eingesetzt werden.
Das Interessante daran ist, dass da Phänomen der repurposed drugs mit dem Moonlighting der Proteine zusammenhängt. Da viele Medikamente im Körper an Proteine binden, die mehr als nur einen biologischen Job haben, entfalten die Wirkstoffe oft ungeahnte „Zweitwirkungen“.
Beispiele wären Ivermectin, Aspirin, Sildenafil (Viagra), Minoxidil, Thalidomid (Contergan), Semaglutid (Ozempic / Wegovy).
Moonlighting erklärt ein großes Rätsel der modernen Genetik, nämlich warum Organismen trotz seiner enormen biologischen Komplexität mit überraschend wenigen Genen auskommen. Mondschein-Proteine erweitern das funktionelle Repertoire eines Lebewesen drastisch, ohne dass das Genom dafür vergrößert werden müsste.
Wenn Allrounder gefährlich werden: Relevanz für Krankheiten
Das Phänomen ist keineswegs nur eine biologische Kuriosität, sondern spielt eine zentrale Rolle in der modernen Medizin und Pathologie:
Krebsforschung: Tumorzellen sind extrem anpassungsfähig. Sie missbrauchen die „Zweitjobs“ gewöhnlicher Stoffwechselenzyme (wie jener aus der Energiegewinnung/Glykolyse), um das Krebswachstum zu beschleunigen, das Immunsystem auszutricksen oder Metastasen zu bilden.
Krankheitserregende Pilze: Medizinisch relevante Pilze nutzen Moonlighting-Proteine an ihrer Zelloberfläche als „Greifhaken“ (Adhäsine), um sich an menschlichem Gewebe festzuheften und Infektionen überhaupt erst zu ermöglichen.
Rätselhafte Erbkrankheiten: Wenn ein einzelnes Gen mutiert ist, führt das manchmal zu völlig unerwarteten, weit verstreuten Symptomen im Körper. Das Verständnis von Moonlighting-Enzymen hilft zu erklären, warum ein einziger genetischer Fehler gleich mehrere unterschiedliche biologische Zahnräder gleichzeitig blockiert und zu vielen verschiedenen, unterschiedlichen Symptomen führen kann.
Moonlighting des Spike-Proteins
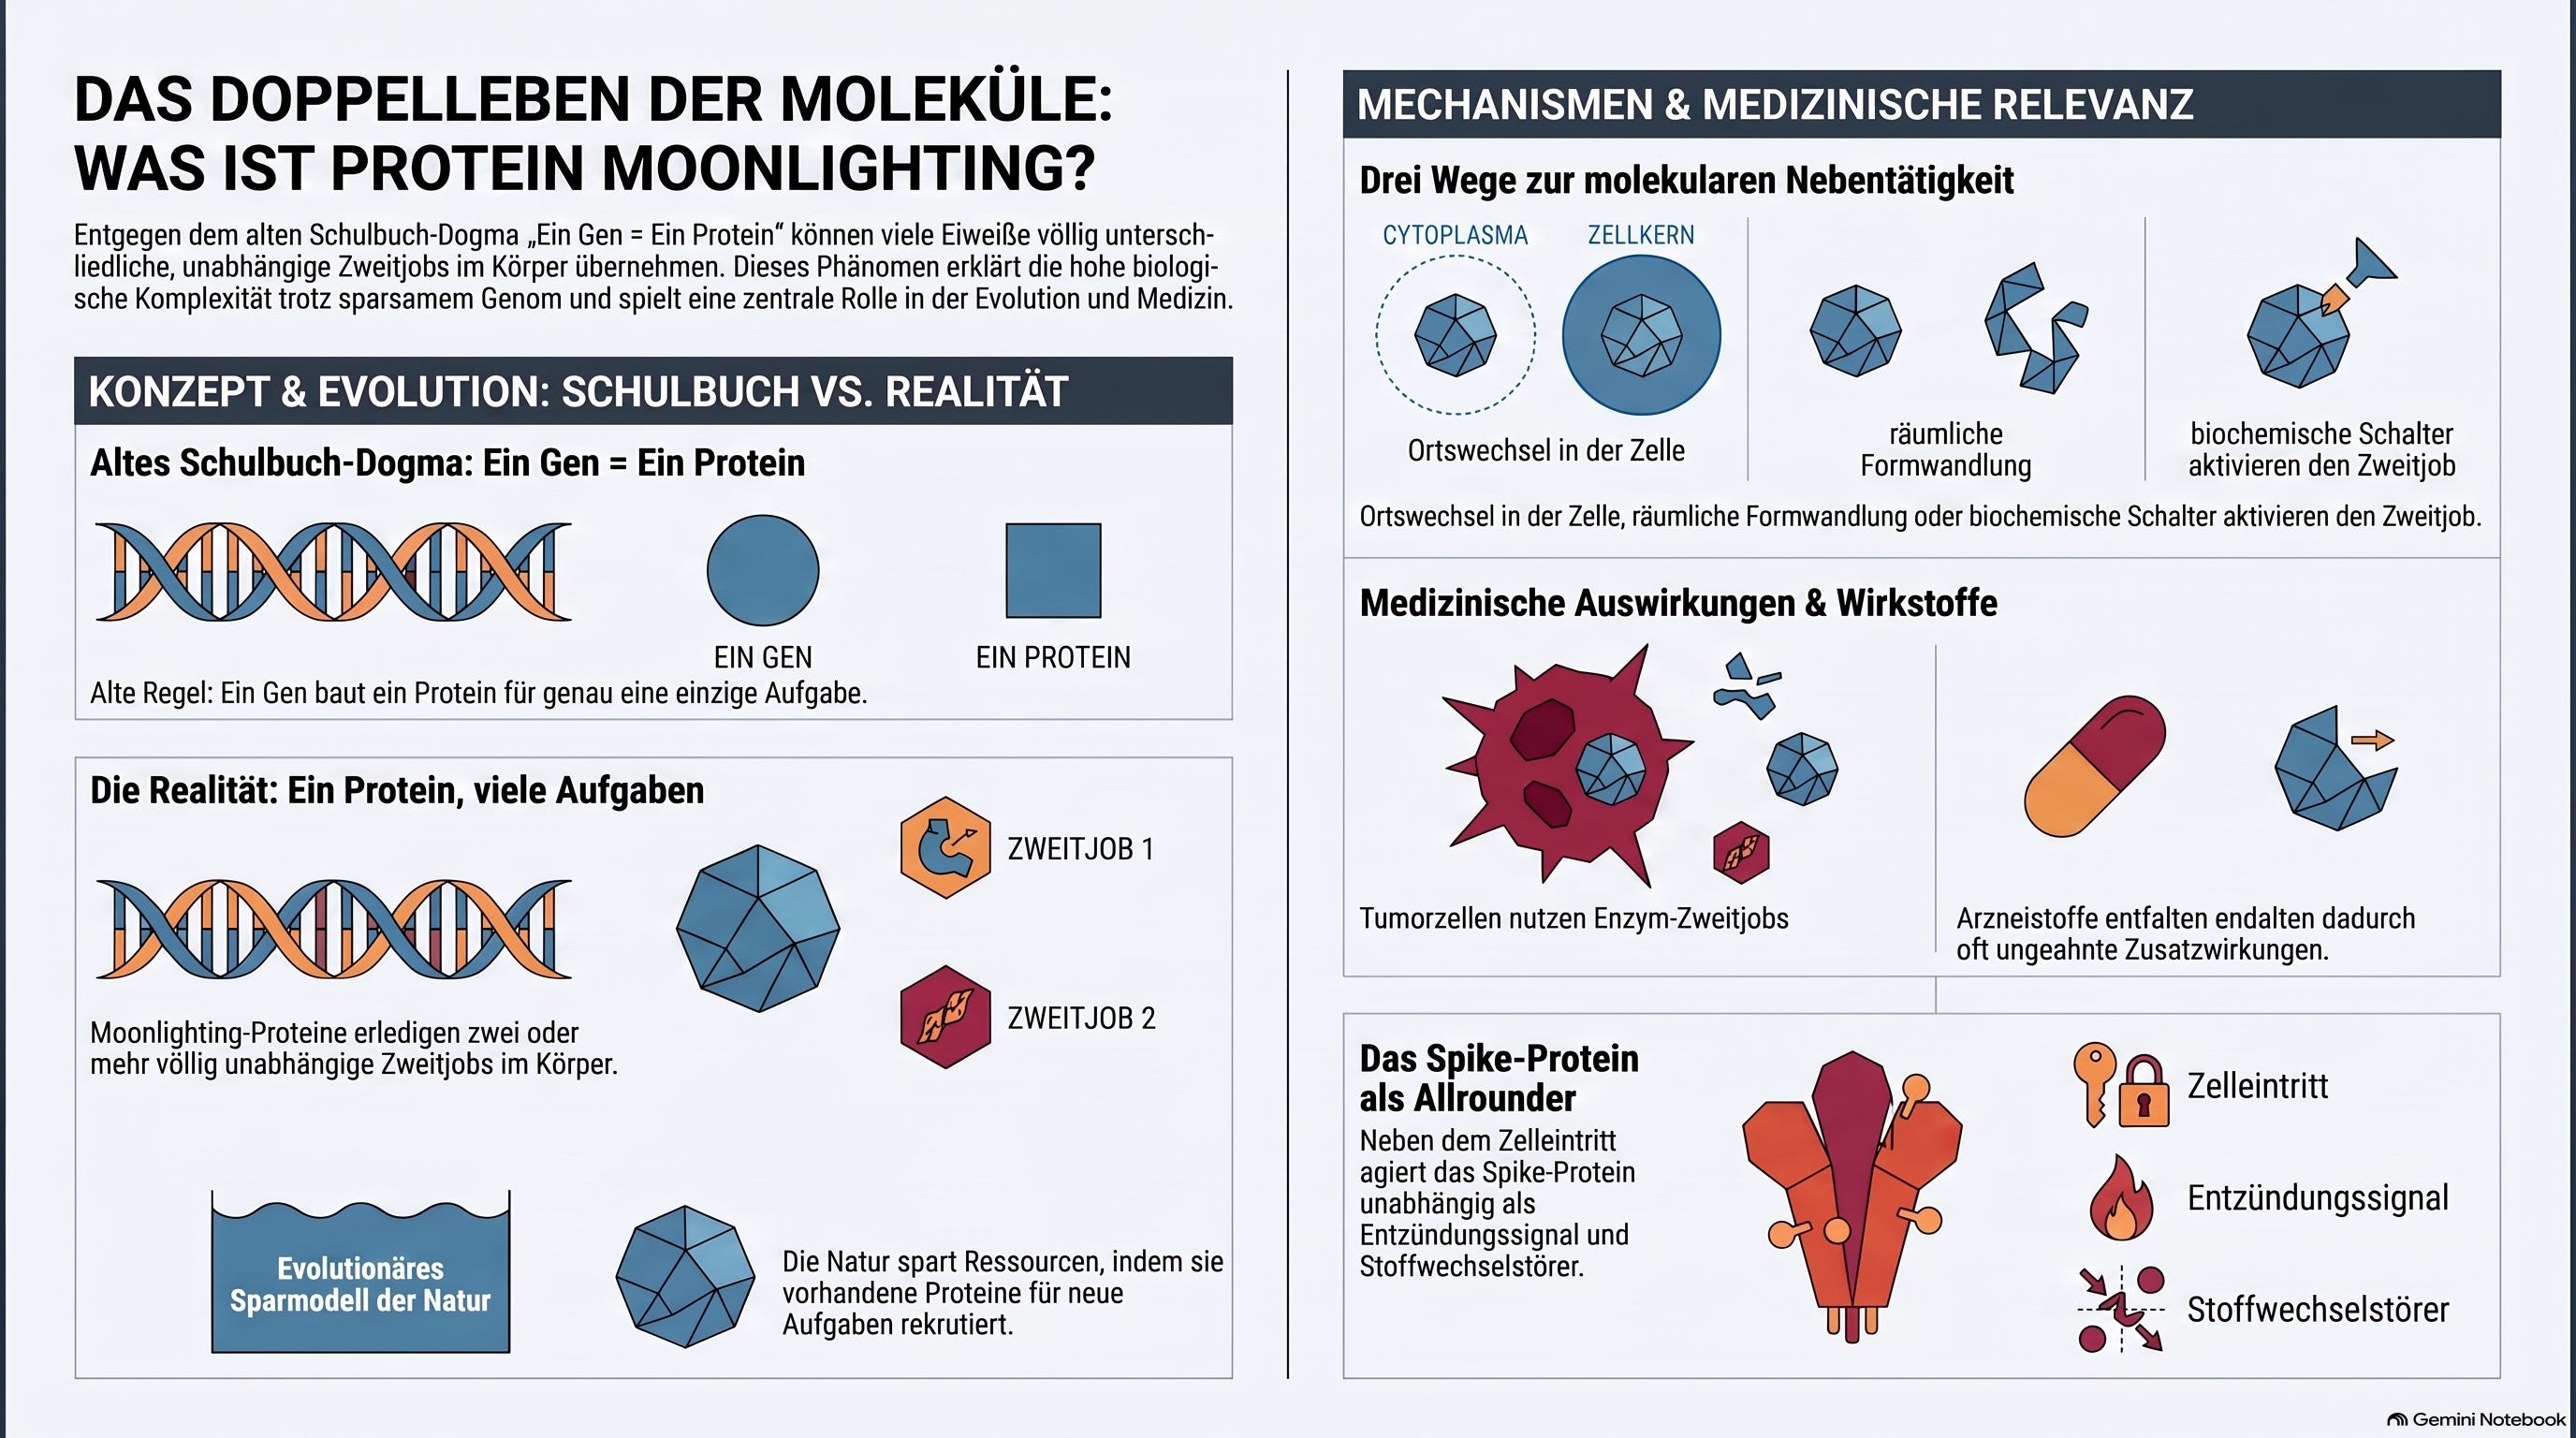
In der wissenschaftlichen Literatur gibt es deutliche Hinweise und zunehmende Belege dafür, dass das Spike-Protein von SARS-CoV-2 ausgeprägte Moonlighting-Eigenschaften besitzt.
In den ersten Phasen der Pandemie galt das Spike-Protein rein als „strukturelles Werkzeug“, quasi der Schlüssel, den das Virus benutzt, um an den ACE2-Rezeptor menschlicher Zellen anzudocken und mit ihnen zu verschmelzen. Inzwischen weiß man jedoch, dass das Protein (insbesondere die freie S1-Untereinheit) nach der Abspaltung weit über diese reine „Schlüsselfunktion“ hinausgeht. Es nimmt aktiv Einfluss auf menschliche Zellprozesse, ohne dass das Virus selbst anwesend sein muss.
1. Der Zweitjob als „PAMP“ (Immunauslöser ohne Virus)
Das Spike-Protein kann völlig unabhängig vom eigentlichen Infektionsvorgang als sogenanntes Pathogen-associated molecular pattern (PAMP) agieren.
Das Spike-Protein bindet direkt an evolutionär sehr alte Alarm-Rezeptoren unseres Immunsystems, die sogenannten Toll-Like-Rezeptoren (insbesondere TLR2 und TLR4).
Dadurch wird eine Kaskade in Gang gesetzt, die Entzündungsbotenstoffe (wie IL-6 oder TNF) freisetzt. Das Spike-Protein betreibt hier Moonlighting, indem es direkt als Entzündungs-Signalmolekül arbeitet, das Immunzellen wie Lungenmakrophagen oder Mikrogliazellen im Gehirn aktiviert, selbst wenn überhaupt kein vermehrungsfähiges Virus in der Zelle ist.
Genauer habe ich das hier ausgearbeitet:
2. Manipulation der zellulären Energie-Zentrale (Mitochondrien)
Es gibt Hinweise darauf, dass das Spike-Protein in der Lage ist, die Funktion der Mitochondrien (den Kraftwerken unserer Zellen) massiv zu stören.
Gelangt das Spike-Protein (oder dessen S1-Teil) in Endothelzellen (die die Innenseite unserer Blutgefäße auskleiden), löst es dort morphologische Veränderungen und Funktionsdefizite in der mitochondrialen Atmung aus.
Hier agiert das strukturelle Oberflächenprotein plötzlich als Metabolismus-Disruptor (Stoffwechsel-Störer) im Inneren der Zelle, was zu oxidativem Stress und Gefäßschäden führen kann.
3. Durchbrechen der Blut-Hirn-Schranke und Neurotoxizität
Das Spike-Protein besitzt die Fähigkeit, die Blut-Hirn-Schranke zu überwinden. Einmal im Gehirn angekommen, zeigt es Eigenschaften, die man sonst von neurodegenerativen Erkrankungen kennt.
Studien deuten darauf hin, dass die S1-Untereinheit des Spike-Proteins die pathologische Aggregation (Verklumpung) von körpereigenen Proteinen wie α-Synuclein (bekannt von der Parkinson-Krankheit) triggern kann.
Das virale Werkzeug wird zum neurotoxischen Protein-Aktivator, was in der Forschung als ein möglicher Puzzlestein für anhaltende neurologische Beschwerden bei Long-COVID (wie die sogenannte „Gehirnnebel“-Müdigkeit) untersucht wird.
4. Blockade des Tumorsuppressors p53
Das p53-Protein ist eines der wichtigsten Schutzmoleküle in unseren Zellen. Es überwacht die DNA, repariert Schäden und zwingt Zellen mit irreparablen Fehlern in den kontrollierten Zelltod (Apoptose), um die Entstehung von Krebs zu verhindern.
Studien zeigen, dass das Spike-Protein (speziell die S2-Untereinheit) tief in dieses Schutzsystem eingreift.
Das Spike-Protein stört im Zellinneren die normale Interaktion zwischen p53 und seinen zellulären Gegenspielern (wie MDM2). Computergestützte Modelle und experimentelle Untersuchungen deuten darauf hin, dass die S2-Untereinheit an p53 bindet oder dessen Funktion im Zellkern massiv unterdrückt.
Die transkriptionelle Aktivität von p53 wird blockiert. Das bedeutet, dass p53 wichtige nachgeschaltete „Schutzgene“ (wie p21 oder den Todesrezeptor DR5) nicht mehr aktivieren kann. In Experimenten führte dies dazu, dass Krebszellen trotz einer Chemotherapie eine höhere Überlebensfähigkeit zeigten und Abwehrmechanismen gegen Tumorbildung geschwächt wurden. Ein strukturelles Werkzeug des Virus mutiert hier also zum Inhibitor der körpereigenen Krebsüberwachung.
5. Syncytienbildung
Die Syncytienbildung ist das Ergebnis der extremen, molekularen Klebrigkeit und Fusionskraft des Spike-Proteins. Biochemisch ist es eine Erweiterung seiner Hauptfunktion, funktionell wirkt es jedoch wie ein zerstörerischer Zweitjob, der maßgeblich zur Gewebeschädigung in der Lunge und den Gefäßen beiträgt.
Die Verbindung aus Fusionsfähigkeit bei geringen Dosen, dem Nachweis im Blutkreislauf via Exosomen und dem Fehlen entsprechender Warnhinweise in den Packungsbeilagen bildet das Fundament für den juristischen Vorwurf eines sogenannten Instruktionsfehlers und eines Konstruktionsfehlers nach dem Arzneimittelgesetz (AMG).
6. Das “Gegen-Moonlighting”: Wie der Körper das Spike-Protein austrickst
Interessanterweise gibt es auch den umgekehrten Fall. Ein bekanntes menschliches Moonlighting-Enzym, die GAPDH (die eigentlich für den Zuckerabbau zuständig ist), besitzt einen nächtlichen „Zweitjob“ in unserer Immunabwehr. Studien zeigen, dass freigesetzte GAPDH im extrazellulären Raum mit hoher Affinität direkt an das Spike-Protein von SARS-CoV-2 bindet. Dadurch blockiert sie die Andockstelle für den ACE2-Rezeptor und bremst das Eindringen des Virus aus.
Das Spike-Protein von SARS-CoV-2 ist ein Paradebeispiel für ein multifunktionales virales Protein. Seine Fähigkeit, unabhängig von der Virusreplikation Entzündungen anzufeuern, Gefäßzellen zu schädigen und Proteine im Gehirn zu beeinflussen, erfüllt per Definition die Kriterien biologischen Moonlightings.
Das hätte man bedenken müssen bzw. prüfen müssen bevor man es von Milliarden von Menschen produzieren lässt. Diese Moonlighting Funktionen wurden von den Herstellern der modRNA-Produkte nicht ansatzweise untersucht. Das ist mehr als nur Fahrlässigkeit.
Rationales Design eines Moonlighting Proteins
Im Protein Engineering gilt das rationale Design, also das gezielte Verändern von Aminosäuren im Computer oder auf Basis von Strukturmodellen (wie dem Einbau des 2P-Locks) als hochentwickelt, aber nicht unfehlbar. Da Proteine hochkomplexe, dynamische Makromoleküle sind, kann der Austausch selbst einzelner Bausteine weitreichende, nicht vorhersehbare Domino-Effekte auf die gesamte Proteinstruktur und deren physikalische Eigenschaften haben.
Das Problem musste bekannt seil, weil Proline verwendet wurden, die generell aufgrund ihrer Struktur problematisch sind.
Daraus ergibt sich in der Wissenschaft eine strikte Pflicht zur umfassenden Charakterisierung.
Wenn Ingenieure ein Protein rational verändern, müssen sie zwingend die physikalischen und biochemischen Parameter empirisch (also im realen Experiment) überprüfen, da Computersimulationen die Realität im lebenden Organismus nicht perfekt abbilden können.
Die Hersteller haben das modifizierte Spike-Protein (S-2P) im Jahr 2020 zwar bezüglich seiner vorgesehenen physikalischen Eigenschaften charakterisiert (Form unter dem Elektronenmikroskop, Bindung an ACE2 via Biacore, Ausbeute bei der Produktion).
Das fundamentale Problem war jedoch, dass sie die vorhersehbaren Folgen des rationalen Designs auf potenzielle Moonlighting-Eigenschaften weitgehend unberücksichtigt ließen.
In Haftungsprozessen und Auskunftsverfahren (§ 84a AMG) ist dieses etablierte Prinzip des Protein Engineerings als stärkstes Argument gegen die Einrede des Entwicklungsrisikos.
Weil in der Wissenschaft seit Jahrzehnten feststeht, dass rationales Proteindesign immer das Risiko unvorhersehbarer physikalischer und funktioneller Veränderungen birgt, war das Auftreten von unerwarteten biologischen Effekten (Moonlighting) eben nicht unvorhersehbar, sondern systemisch zu erwarten.
Ein Hersteller, der ein künstlich modifiziertes Protein milliardenfach in Menschen injizieren lässt, ohne zuvor dessen vollständiges biophysikalisches Profil im lebenden System lückenlos charakterisiert zu haben, verletzt seine Sorgfaltspflicht bei der Produktentwicklung.
Obwohl dieses biotechnologische Argument absolut valide ist, tun sich deutsche Gerichte mit der rechtlichen Umsetzung schwer. Die Richter argumentieren meist rein formal: Die Zulassungsbehörden (EMA) kannten den regulatorischen Prüfrahmen für das Jahr 2020. Da die Behörden die von den Herstellern eingereichten (wenn auch unvollständigen) Charakterisierungsdaten im Rahmen der Notfall- und bedingten Zulassung als „ausreichend“ akzeptiert haben, wird den Herstellern juristisch kein Vorwurf der Fahrlässigkeit gemacht. Das verbleibende Risiko einer unvollständigen Charakterisierung wurde somit politisch und regulatorisch in Kauf genommen.
Fazit
Mondschein-Proteine zeigen uns, dass die Maschinerie des Lebens viel flexibler und vernetzter ist als lange Zeit gedacht. Die Moonlighting Eigenschaften des Spike-Proteins wurden von den Herstellern der Impfstoffe nicht bedacht, nicht untersucht oder schlicht einfach ignoriert.
Die Frage, wie es haftungsrechtlich zu bewerten ist, wenn Hersteller ein bekanntes biologisches Prinzip wie das Protein Moonlighting (und dessen spezifische Ausprägung beim SARS-CoV-2-Spike-Protein, etwa bezüglich p53) in Zulassungsstudien nicht explizit untersucht oder abgewogen haben, berührt den Kern des Arzneimittel- und Produkthaftungsrechts.
Da es sich um ein etabliertes Prinzip handelt, müssen Hersteller den generellen Stand der Wissenschaft und Technik kennen. Wenn ein theoretisches Risiko im Raum steht, müssen sie im Rahmen der Risikoanalyse prüfen, ob das gewählte Antigen (hier das Spike-Protein) solche pathogenen Eigenschaften aufweisen könnte.
Die Frage, welche Moonlighting-Eigenschaften des SARS-CoV-2-Spike-Proteins bereits vor dem Stichtag des 1. Januar 2021 wissenschaftlich veröffentlicht waren, ist für die juristische Beurteilung von zentraler Bedeutung.
Aus Sicht des Arzneimittelhaftungsrechts zeigt diese Chronologie, dass am 1. Januar 2021 bereits bekannt und veröffentlicht war, dass das Spike-Protein:
Eine eigenständige, vom Virus unabhängige Entzündungswirkung (über TLRs) besitzt.
Gefäßwände und Mitochondrien schädigen kann.
An Nervenzellen (über Neuropilin-1) andocken kann.
Die Verteidigungslinie der Hersteller basiert vor Gericht daher meist nicht darauf, dass diese Eigenschaften unbekannt waren, sondern dass sie beim Impfstoff-Spike-Protein durch das molekulare Design gezielt neutralisiert wurden. Durch die eingebaute 2P-Mutation (zwei Prolin-Austausche in der S2-Untereinheit) wurde das Impfstoff-Spike-Protein in der sogenannten „Präfusions-Konformation“ starr eingefroren. Die Hersteller argumentierten (und argumentieren bis heute), dass dieses künstlich fixierte und an die Muskelzelle gebundene Protein im Gegensatz zum flexiblen, freien Virus-Spike-Protein im lebenden Menschen keine biologisch aktiven Moonlighting-Schäden anrichten könne.
Die Behauptung, das P-Lock (die 2P-Mutation) würde das Protein im echten menschlichen Körper (in vivo) lückenlos kontrollieren, hat sich durch die reale Forschung der vergangenen Jahre als wissenschaftlich unvollständig erwiesen.
Unabhängige, Messungen haben die Behauptungen der Hersteller widerlegt. Bei einem Teil der geimpften Personen konnte freies, zirkulierendes Spike-Protein (und die abgespaltene S1-Untereinheit) noch Wochen oder sogar Monate nach der Impfung im Blut nachgewiesen werden. Das P-Lock hat also nachweislich nicht funktioniert.
Wissenschaftlich ist bewiesen, dass das P-Lock nicht das leistete, was die PR-Abteilungen der Hersteller suggerierten (lokaler Verbleib und absolute Stabilität). Juristisch reicht dieses biochemische Versagen jedoch meist nicht für eine Herstellerhaftung aus, da die Behörden die unvollständige Datenbasis im Jahr 2020 wissentlich akzeptiert und das Produkt so zugelassen haben.
Wer argumentiert, dass das Spike-Protein durch seine instabile, native Form ohne P-Lock unkontrollierte Moonlighting-Schäden (Gefäß- und Mitochondrientoxizität) im Körper anrichten konnte, hat bei AstraZeneca die stärksten biochemischen Argumente auf seiner Seite, da die “Prolin-Stabilisierung” nachweislich gar nicht erst eingebaut wurde.
Da dieses verzerrende Bindungsverhalten und die mitochondriale Toxizität im Dezember 2020 publiziert waren, hätten Hersteller im Rahmen ihrer Risikoanalyse zwingend prüfen müssen, ob das über die mRNA-Impfung im menschlichen Körper hergestellte Spike-Protein dieselben verheerenden Effekte auf die Mitochondrien der Gefäße hat.
Da in den offiziellen Packungsbeilagen (Fach- und Gebrauchsinformationen) kein Warnhinweis dazu existiert, dass das erzeugte Antigen systemisch über Exosomen im Blut zirkulieren und potenzielle zelluläre Fusionen oder langanhaltende Gewebeirritationen auslösen kann, wurden Ärzte und Patienten unvollständig über das reale Risikoprofil aufgeklärt. Hätten die Hersteller die publizierten Daten zur Gewebetoxizität und zur Zirkulation (ab Frühjahr 2021) zeitnah in den Beipackzettel aufnehmen müssen, wäre dies ein Eingeständnis des Risikos gewesen. Das Unterlassen dieser Anpassung wird in einigen Klagen als Haftungsgrund angeführt.
Mondschein-Proteine sind also kein Konzept, das nur für die Wissenschaft und Lehre interessant sind. Diese Moonlighting Eigenschaften haben handfeste gesundheitliche Folgen für betroffene Menschen.
Um Ordnung in dieses biologische Multitasking zu bringen, erfasst die Wissenschaft diese Proteine in großen, zentralen Datenbanken wie dem MoonProt-Projekt.
http://www.moonlightingproteins.org/
Dieses tiefere Verständnis der „Zweitjobs“ ist für Ärzte und Therpeuten wichtig, um die langfristigen Folgen der Spikeopathie besser zu verstehen, und entsprechende Therapien zu entwickeln.
Unterstützungsmöglichkeiten:
Bücherwunschzettel: https://www.amazon.de/registries/gl/owner-view/30LG3DJ4ET90L?ref_=list_d_gl_lfu_nav
Andere Unterstützungsmöglichkeiten für Holgers und meine Forschung:
Konto für Unterstützung für das Projekt Scan 2000
Dr. Merse DE34 4305 0001 0302 7851 75 Sparkasse Bochum
Horst Reissner: IBAN DE51 4401 0046 0406 4514 67
Dr. S. Stebel: https://ko-fi.com/einmalmitprofisarbeiten
Paypal: [email protected]
Jeffery CJ. An introduction to protein moonlighting. Biochem Soc Trans. 2014 Dec;42(6):1679-83. doi: 10.1042/BST20140226. PMID: 25399589. https://pubmed.ncbi.nlm.nih.gov/25399589/
Gupta MN, Uversky VN. Moonlighting enzymes: when cellular context defines specificity. Cell Mol Life Sci. 2023 Apr 24;80(5):130. doi: 10.1007/s00018-023-04781-0. PMID: 37093283; PMCID: PMC11073002. https://pmc.ncbi.nlm.nih.gov/articles/PMC11073002/
Sirover MA. Pleiotropic effects of moonlighting glyceraldehyde-3-phosphate dehydrogenase (GAPDH) in cancer progression, invasiveness, and metastases. Cancer Metastasis Rev. 2018 Dec;37(4):665-676. doi: 10.1007/s10555-018-9764-7. PMID: 30209795. https://pubmed.ncbi.nlm.nih.gov/30209795/
Jeffery CJ. An introduction to protein moonlighting. Biochem Soc Trans. 2014 Dec;42(6):1679-83. doi: 10.1042/BST20140226. PMID: 25399589. https://pubmed.ncbi.nlm.nih.gov/25399589/
Espinosa-Cantú A, Cruz-Bonilla E, Noda-Garcia L, DeLuna A. Multiple Forms of Multifunctional Proteins in Health and Disease. Front Cell Dev Biol. 2020 Jun 10;8:451. doi: 10.3389/fcell.2020.00451. PMID: 32587857; PMCID: PMC7297953. https://pubmed.ncbi.nlm.nih.gov/32587857/
Gupta MN, Uversky VN. Moonlighting enzymes: when cellular context defines specificity. Cell Mol Life Sci. 2023 Apr 24;80(5):130. doi: 10.1007/s00018-023-04781-0. PMID: 37093283; PMCID: PMC11073002. https://pubmed.ncbi.nlm.nih.gov/37093283/
Gupta MN, Uversky VN. Moonlighting enzymes: when cellular context defines specificity. Cell Mol Life Sci. 2023 Apr 24;80(5):130. doi: 10.1007/s00018-023-04781-0. PMID: 37093283; PMCID: PMC11073002. https://pmc.ncbi.nlm.nih.gov/articles/PMC11073002/
Jeffery CJ. An introduction to protein moonlighting. Biochem Soc Trans. 2014 Dec;42(6):1679-83. doi: 10.1042/BST20140226. PMID: 25399589. https://pubmed.ncbi.nlm.nih.gov/25399589/
Jeffery CJ. An introduction to protein moonlighting. Biochem Soc Trans. 2014 Dec;42(6):1679-83. doi: 10.1042/BST20140226. PMID: 25399589. https://pubmed.ncbi.nlm.nih.gov/25399589/
Espinosa-Cantú A, Cruz-Bonilla E, Noda-Garcia L, DeLuna A. Multiple Forms of Multifunctional Proteins in Health and Disease. Front Cell Dev Biol. 2020 Jun 10;8:451. doi: 10.3389/fcell.2020.00451. PMID: 32587857; PMCID: PMC7297953. https://pubmed.ncbi.nlm.nih.gov/32587857/
Shegay PV, Shatova OP, Zabolotneva AA, Shestopalov AV, Kaprin AD. Moonlight functions of glycolytic enzymes in cancer. Front Mol Biosci. 2023 Jun 28;10:1076138. doi: 10.3389/fmolb.2023.1076138. PMID: 37449059; PMCID: PMC10337784. https://pubmed.ncbi.nlm.nih.gov/37449059/
Min KW, Lee SH, Baek SJ. Moonlighting proteins in cancer. Cancer Lett. 2016 Jan 1;370(1):108-16. doi: 10.1016/j.canlet.2015.09.022. Epub 2015 Oct 20. PMID: 26499805; PMCID: PMC4684795. https://pubmed.ncbi.nlm.nih.gov/26499805/
Arvizu-Rubio VJ, García-Carnero LC, Mora-Montes HM. Moonlighting proteins in medically relevant fungi. PeerJ. 2022 Sep 13;10:e14001. doi: 10.7717/peerj.14001. PMID: 36117533; PMCID: PMC9480056. https://pubmed.ncbi.nlm.nih.gov/36117533/
Sriram G, Martinez JA, McCabe ER, Liao JC, Dipple KM. Single-gene disorders: what role could moonlighting enzymes play? Am J Hum Genet. 2005 Jun;76(6):911-24. doi: 10.1086/430799. Epub 2005 Apr 22. PMID: 15877277; PMCID: PMC1196451. https://pubmed.ncbi.nlm.nih.gov/15877277/
Huang Y, Yang C, Xu XF, Xu W, Liu SW. Structural and functional properties of SARS-CoV-2 spike protein: potential antivirus drug development for COVID-19. Acta Pharmacol Sin. 2020 Sep;41(9):1141-1149. doi: 10.1038/s41401-020-0485-4. Epub 2020 Aug 3. PMID: 32747721; PMCID: PMC7396720. https://pmc.ncbi.nlm.nih.gov/articles/PMC7396720/
Li F. Structure, Function, and Evolution of Coronavirus Spike Proteins. Annu Rev Virol. 2016 Sep 29;3(1):237-261. doi: 10.1146/annurev-virology-110615-042301. Epub 2016 Aug 25. PMID: 27578435; PMCID: PMC5457962. https://pmc.ncbi.nlm.nih.gov/articles/PMC5457962/
Frank MG, Fleshner M, Maier SF. Exploring the immunogenic properties of SARS-CoV-2 structural proteins: PAMP:TLR signaling in the mediation of the neuroinflammatory and neurologic sequelae of COVID-19. Brain Behav Immun. 2023 Jul;111:259-269. doi: 10.1016/j.bbi.2023.04.009. Epub 2023 Apr 27. PMID: 37116592; PMCID: PMC10132835. https://pmc.ncbi.nlm.nih.gov/articles/PMC10132835/
Kim ES, Jeon MT, Kim KS, Lee S, Kim S, Kim DG. Spike Proteins of SARS-CoV-2 Induce Pathological Changes in Molecular Delivery and Metabolic Function in the Brain Endothelial Cells. Viruses. 2021 Oct 8;13(10):2021. doi: 10.3390/v13102021. PMID: 34696455; PMCID: PMC8538996. https://pubmed.ncbi.nlm.nih.gov/34696455/
Kim ES, Jeon MT, Kim KS, Lee S, Kim S, Kim DG. Spike Proteins of SARS-CoV-2 Induce Pathological Changes in Molecular Delivery and Metabolic Function in the Brain Endothelial Cells. Viruses. 2021 Oct 8;13(10):2021. doi: 10.3390/v13102021. PMID: 34696455; PMCID: PMC8538996. https://pubmed.ncbi.nlm.nih.gov/34696455/
Menezes, F., Da Fonseca Palmeira, J., Oliveira, J. D. S., Argañaraz, G. A., Soares, C. R. J., Nóbrega, O. T., Ribeiro, B. M., & Argañaraz, E. R. (2024). Unraveling the SARS-CoV-2 spike protein long-term effect on neuro-PASC. Frontiers in Cellular Neuroscience, 18, 1481963. https://doi.org/10.3389/fncel.2024.1481963
Kim ES, Jeon MT, Kim KS, Lee S, Kim S, Kim DG. Spike Proteins of SARS-CoV-2 Induce Pathological Changes in Molecular Delivery and Metabolic Function in the Brain Endothelial Cells. Viruses. 2021 Oct 8;13(10):2021. doi: 10.3390/v13102021. PMID: 34696455; PMCID: PMC8538996. https://pubmed.ncbi.nlm.nih.gov/34696455/
Theoharides TC. Could SARS-CoV-2 Spike Protein Be Responsible for Long-COVID Syndrome? Mol Neurobiol. 2022 Mar;59(3):1850-1861. doi: 10.1007/s12035-021-02696-0. Epub 2022 Jan 13. PMID: 35028901; PMCID: PMC8757925. https://pubmed.ncbi.nlm.nih.gov/35028901/
Frank MG, Fleshner M, Maier SF. Exploring the immunogenic properties of SARS-CoV-2 structural proteins: PAMP:TLR signaling in the mediation of the neuroinflammatory and neurologic sequelae of COVID-19. Brain Behav Immun. 2023 Jul;111:259-269. doi: 10.1016/j.bbi.2023.04.009. Epub 2023 Apr 27. PMID: 37116592; PMCID: PMC10132835. https://pmc.ncbi.nlm.nih.gov/articles/PMC10132835/
Chang, M. H., Park, J. H., Lee, H. K., Choi, J. Y., & Koh, Y. H. (2024). SARS-COV-2 spike protein 1 causes aggregation of Α-Synuclein via Microglia-Induced inflammation and production of mitochondrial ROS: Potential therapeutic applications of metformin. Biomedicines, 12(6), 1223. https://doi.org/10.3390/biomedicines12061223
Theoharides TC. Could SARS-CoV-2 Spike Protein Be Responsible for Long-COVID Syndrome? Mol Neurobiol. 2022 Mar;59(3):1850-1861. doi: 10.1007/s12035-021-02696-0. Epub 2022 Jan 13. PMID: 35028901; PMCID: PMC8757925. https://pubmed.ncbi.nlm.nih.gov/35028901/
Chang, M. H., Park, J. H., Lee, H. K., Choi, J. Y., & Koh, Y. H. (2024). SARS-COV-2 spike protein 1 causes aggregation of Α-Synuclein via Microglia-Induced inflammation and production of mitochondrial ROS: Potential therapeutic applications of metformin. Biomedicines, 12(6), 1223. https://doi.org/10.3390/biomedicines12061223
Zhang S, El-Deiry WS. Transfected SARS-CoV-2 spike DNA for mammalian cell expression inhibits p53 activation of p21(WAF1), TRAIL Death Receptor DR5 and MDM2 proteins in cancer cells and increases cancer cell viability after chemotherapy exposure. Oncotarget. 2024 May 3;15:275-284. doi: 10.18632/oncotarget.28582. PMID: 38709242; PMCID: PMC11073320. https://pmc.ncbi.nlm.nih.gov/articles/PMC11073320/
Singh, N., & Singh, A. B. (2020). S2 subunit of SARS-nCoV-2 interacts with tumor suppressor protein p53 and BRCA: an in silico study. Translational Oncology, 13(10), 100814. https://doi.org/10.1016/j.tranon.2020.100814
Zhang S, El-Deiry WS. Transfected SARS-CoV-2 spike DNA for mammalian cell expression inhibits p53 activation of p21(WAF1), TRAIL Death Receptor DR5 and MDM2 proteins in cancer cells and increases cancer cell viability after chemotherapy exposure. Oncotarget. 2024 May 3;15:275-284. doi: 10.18632/oncotarget.28582. PMID: 38709242; PMCID: PMC11073320. https://pmc.ncbi.nlm.nih.gov/articles/PMC11073320/
Theuerkauf SA, Michels A, Riechert V, Maier TJ, Flory E, Cichutek K, Buchholz CJ. Quantitative assays reveal cell fusion at minimal levels of SARS-CoV-2 spike protein and fusion from without. iScience. 2021 Mar 19;24(3):102170. doi: 10.1016/j.isci.2021.102170. Epub 2021 Feb 9. PMID: 33585805; PMCID: PMC7871100. https://pmc.ncbi.nlm.nih.gov/articles/PMC7871100/
Zhang, Z., Zheng, Y., Niu, Z., Zhang, B., Wang, C., Yao, X., Peng, H., Franca, D. N., Wang, Y., Zhu, Y., Su, Y., Tang, M., Jiang, X., Ren, H., He, M., Wang, Y., Gao, L., Zhao, P., Shi, H., . . . Sun, Q. (2021). SARS-CoV-2 spike protein dictates syncytium-mediated lymphocyte elimination. Cell Death and Differentiation, 28(9), 2765–2777. https://doi.org/10.1038/s41418-021-00782-3 https://www.nature.com/articles/s41418-021-00782-3
Rajah MM, Bernier A, Buchrieser J, Schwartz O. The Mechanism and Consequences of SARS-CoV-2 Spike-Mediated Fusion and Syncytia Formation. J Mol Biol. 2022 Mar 30;434(6):167280. doi: 10.1016/j.jmb.2021.167280. Epub 2021 Oct 1. PMID: 34606831; PMCID: PMC8485708. https://pmc.ncbi.nlm.nih.gov/articles/PMC8485708/
Ali, H., Naseem, A., & Siddiqui, Z. I. (2023). SARS-CoV-2 Syncytium under the Radar: Molecular Insights of the Spike-Induced Syncytia and Potential Strategies to Limit SARS-CoV-2 Replication. Journal of Clinical Medicine, 12(18), 6079. https://doi.org/10.3390/jcm12186079
Li, H., Wan, L., Liu, M., Ma, E., Huang, L., Yang, Y., Li, Q., Fang, Y., Li, J., Han, B., Zhang, C., Sun, L., Hou, X., Li, H., Sun, M., Qian, S., Duan, X., Zhao, R., Yang, X., . . . Zhong, H. (2024). SARS-CoV-2 spike-induced syncytia are senescent and contribute to exacerbated heart failure. PLoS Pathogens, 20(8), e1012291. https://doi.org/10.1371/journal.ppat.1012291
Bansal S, Perincheri S, Fleming T, Poulson C, Tiffany B, Bremner RM, Mohanakumar T. Cutting Edge: Circulating Exosomes with COVID Spike Protein Are Induced by BNT162b2 (Pfizer-BioNTech) Vaccination prior to Development of Antibodies: A Novel Mechanism for Immune Activation by mRNA Vaccines. J Immunol. 2021 Nov 15;207(10):2405-2410. doi: 10.4049/jimmunol.2100637. Epub 2021 Oct 15. PMID: 34654691; PMCID: PMC11073804. https://pmc.ncbi.nlm.nih.gov/articles/PMC11073804/
Dilawari, R., Chaubey, G. K., Modanwal, R., Dhiman, A., Talukdar, S., Kumar, A., Raje, C. I., & Raje, M. (2024). Glyceraldehyde-3-Phosphate Dehydrogenase Binds with Spike Protein and Inhibits the Entry of SARS-CoV-2 into Host Cells. Journal of Innate Immunity, 16(1), 133–142. https://doi.org/10.1159/000535634
Li F. Structure, Function, and Evolution of Coronavirus Spike Proteins. Annu Rev Virol. 2016 Sep 29;3(1):237-261. doi: 10.1146/annurev-virology-110615-042301. Epub 2016 Aug 25. PMID: 27578435; PMCID: PMC5457962. https://pmc.ncbi.nlm.nih.gov/articles/PMC5457962/
Stebel, S. C., Gaida, A., Arndt, K. M., & Müller, K. M. (2008). Directed protein Evolution. In Springer protocols handbooks/Springer protocols (pp. 631–656). https://doi.org/10.1007/978-1-60327-375-6_36
Hellinga, H. W. (1997). Rational protein design: Combining theory and experiment. Proceedings of the National Academy of Sciences, 94(19), 10015–10017. https://doi.org/10.1073/pnas.94.19.10015
Kumavath R, Barh D, Andrade BS, Imchen M, Aburjaile FF, Ch A, Rodrigues DLN, Tiwari S, Alzahrani KJ, Góes-Neto A, Weener ME, Ghosh P, Azevedo V. The Spike of SARS-CoV-2: Uniqueness and Applications. Front Immunol. 2021 Jul 8;12:663912. doi: 10.3389/fimmu.2021.663912. PMID: 34305894; PMCID: PMC8297464. https://pmc.ncbi.nlm.nih.gov/articles/PMC8297464/
Lei Y, Zhang J, Schiavon CR, He M, Chen L, Shen H, Zhang Y, Yin Q, Cho Y, Andrade L, Shadel GS, Hepokoski M, Lei T, Wang H, Zhang J, Yuan JX, Malhotra A, Manor U, Wang S, Yuan ZY, Shyy JY. SARS-CoV-2 Spike Protein Impairs Endothelial Function via Downregulation of ACE2. bioRxiv [Preprint]. 2020 Dec 4:2020.12.04.409144. doi: 10.1101/2020.12.04.409144. Update in: Circ Res. 2021 Apr 30;128(9):1323-1326. doi: 10.1161/CIRCRESAHA.121.318902. PMID: 33300001; PMCID: PMC7724674. https://pmc.ncbi.nlm.nih.gov/articles/PMC7724674/
Kumavath R, Barh D, Andrade BS, Imchen M, Aburjaile FF, Ch A, Rodrigues DLN, Tiwari S, Alzahrani KJ, Góes-Neto A, Weener ME, Ghosh P, Azevedo V. The Spike of SARS-CoV-2: Uniqueness and Applications. Front Immunol. 2021 Jul 8;12:663912. doi: 10.3389/fimmu.2021.663912. PMID: 34305894; PMCID: PMC8297464. https://pmc.ncbi.nlm.nih.gov/articles/PMC8297464/
Xia X. Domains and Functions of Spike Protein in Sars-Cov-2 in the Context of Vaccine Design. Viruses. 2021 Jan 14;13(1):109. doi: 10.3390/v13010109. PMID: 33466921; PMCID: PMC7829931. https://pmc.ncbi.nlm.nih.gov/articles/PMC7829931/
Boros, L. G., Kyriakopoulos, A. M., Brogna, C., Piscopo, M., McCullough, P. A., & Seneff, S. (2024). Long‐lasting, biochemically modified mRNA, and its frameshifted recombinant spike proteins in human tissues and circulation after COVID ‐19 vaccination. Pharmacology Research & Perspectives, 12(3), e1218. https://doi.org/10.1002/prp2.1218
Krauson, A. J., Casimero, F. V. C., Siddiquee, Z., & Stone, J. R. (2023). Duration of SARS-CoV-2 mRNA vaccine persistence and factors associated with cardiac involvement in recently vaccinated patients. Npj Vaccines, 8(1), 141. https://doi.org/10.1038/s41541-023-00742-7
Yonker LM, Swank Z, Bartsch YC, Burns MD, Kane A, Boribong BP, Davis JP, Loiselle M, Novak T, Senussi Y, Cheng CA, Burgess E, Edlow AG, Chou J, Dionne A, Balaguru D, Lahoud-Rahme M, Arditi M, Julg B, Randolph AG, Alter G, Fasano A, Walt DR. Circulating Spike Protein Detected in Post-COVID-19 mRNA Vaccine Myocarditis. Circulation. 2023 Mar 14;147(11):867-876. doi: 10.1161/CIRCULATIONAHA.122.061025. Epub 2023 Jan 4. PMID: 36597886; PMCID: PMC10010667. https://pmc.ncbi.nlm.nih.gov/articles/PMC10010667/
Boros, L. G., Kyriakopoulos, A. M., Brogna, C., Piscopo, M., McCullough, P. A., & Seneff, S. (2024). Long‐lasting, biochemically modified mRNA, and its frameshifted recombinant spike proteins in human tissues and circulation after COVID ‐19 vaccination. Pharmacology Research & Perspectives, 12(3), e1218. https://doi.org/10.1002/prp2.1218
Krauson, A. J., Casimero, F. V. C., Siddiquee, Z., & Stone, J. R. (2023). Duration of SARS-CoV-2 mRNA vaccine persistence and factors associated with cardiac involvement in recently vaccinated patients. Npj Vaccines, 8(1), 141. https://doi.org/10.1038/s41541-023-00742-7
Trougakos, I. P., Terpos, E., Alexopoulos, H., Politou, M., Paraskevis, D., Scorilas, A., Kastritis, E., Andreakos, E., & Dimopoulos, M. A. (2022). Adverse effects of COVID-19 mRNA vaccines: the spike hypothesis. Trends in Molecular Medicine, 28(7), 542–554. https://doi.org/10.1016/j.molmed.2022.04.007
Watanabe Y, Mendonça L, Allen ER, Howe A, Lee M, Allen JD, Chawla H, Pulido D, Donnellan F, Davies H, Ulaszewska M, Belij-Rammerstorfer S, Morris S, Krebs AS, Dejnirattisai W, Mongkolsapaya J, Supasa P, Screaton GR, Green CM, Lambe T, Zhang P, Gilbert SC, Crispin M. Native-like SARS-CoV-2 Spike Glycoprotein Expressed by ChAdOx1 nCoV-19/AZD1222 Vaccine. ACS Cent Sci. 2021 Apr 28;7(4):594-602. doi: 10.1021/acscentsci.1c00080. Epub 2021 Apr 2. PMID: 34056089; PMCID: PMC8043200. https://pmc.ncbi.nlm.nih.gov/articles/PMC8043200/
Lei Y, Zhang J, Schiavon CR, He M, Chen L, Shen H, Zhang Y, Yin Q, Cho Y, Andrade L, Shadel GS, Hepokoski M, Lei T, Wang H, Zhang J, Yuan JX, Malhotra A, Manor U, Wang S, Yuan ZY, Shyy JY. SARS-CoV-2 Spike Protein Impairs Endothelial Function via Downregulation of ACE2. bioRxiv [Preprint]. 2020 Dec 4:2020.12.04.409144. doi: 10.1101/2020.12.04.409144. Update in: Circ Res. 2021 Apr 30;128(9):1323-1326. doi: 10.1161/CIRCRESAHA.121.318902. PMID: 33300001; PMCID: PMC7724674. https://pmc.ncbi.nlm.nih.gov/articles/PMC7724674/
Mani M, Chen C, Amblee V, Liu H, Mathur T, Zwicke G, Zabad S, Patel B, Thakkar J, Jeffery CJ. MoonProt: a database for proteins that are known to moonlight. Nucleic Acids Res. 2015 Jan;43(Database issue):D277-82. doi: 10.1093/nar/gku954. Epub 2014 Oct 16. PMID: 25324305; PMCID: PMC4384022. https://pubmed.ncbi.nlm.nih.gov/25324305/